4.12 Ascidia SAAF
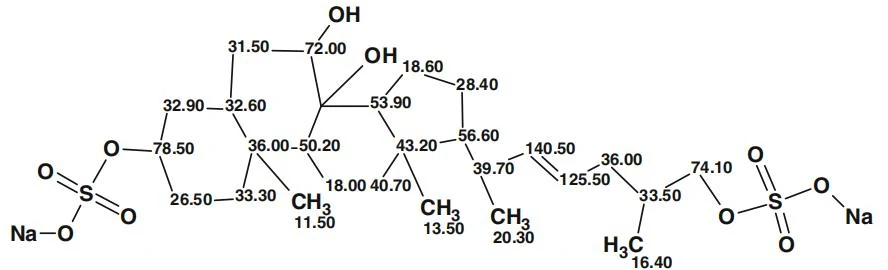
精子激活与趋化作用是动物界(包括人类)中普遍存在的生物学现象,对受精过程至关重要。此前已发现某些单一化学物质可同时诱导精子激活与趋化作用。为阐明海鞘类动物精子趋化作用的属特异性分子机制,Matsumori 等[14]对采自海鞘Ascidia sydneiensis 卵中的新型化合物Ascidia-SAAF 2(4.23)进行了结构研究。
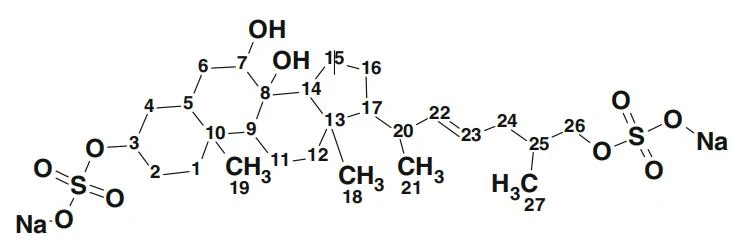
Ascidia-SAAF 2 从高效液相色谱(HPLC)活性馏分中分离获得,总量为4 nmol(2.6 μg)。通过核磁共振(NMR)与质谱(MS)光谱联用技术解析其化学结构。负离子高分辨质谱测得分子离子峰m/z 296.1188([M−2Na]²⁻,计算值296.1193),确定其分子式为C₂₇H₄₄O₁₀S₂Na₂,提示该化合物为已知分子Ciona-SAAF(C₂₇H₄₆O₁₀S₂Na₂)的脱氢或氧化衍生物。
基于冷探针技术获取的梯度双量子滤波COSY(gDQF-COSY)与梯度异核多键相关(gHMBC)谱图,明确鉴定出C22-C23 双键的存在。尽管H22 与H23 的化学位移高度重叠导致二阶信号产生,但通过谱峰模拟推演出二者间³JHH 偶合常数高达17 Hz,据此确认双键为E 构型。此外,H21 与H24 间缺乏ROE 响应,进一步支持该构型的合理性。
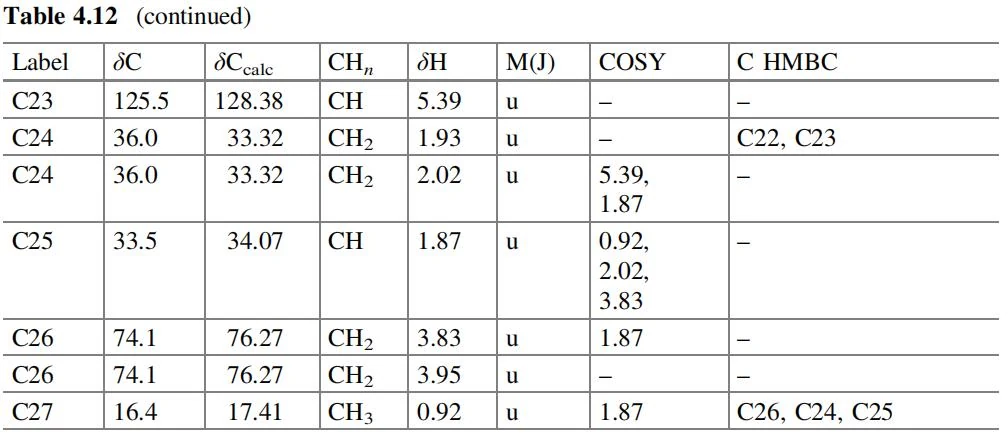
用于分子结构解析的核磁共振数据(¹H、¹³C、HSQC、COSY 及HMBC)详见表4.12。
基于此数据构建的分子连接图(MCD)见图4.27。
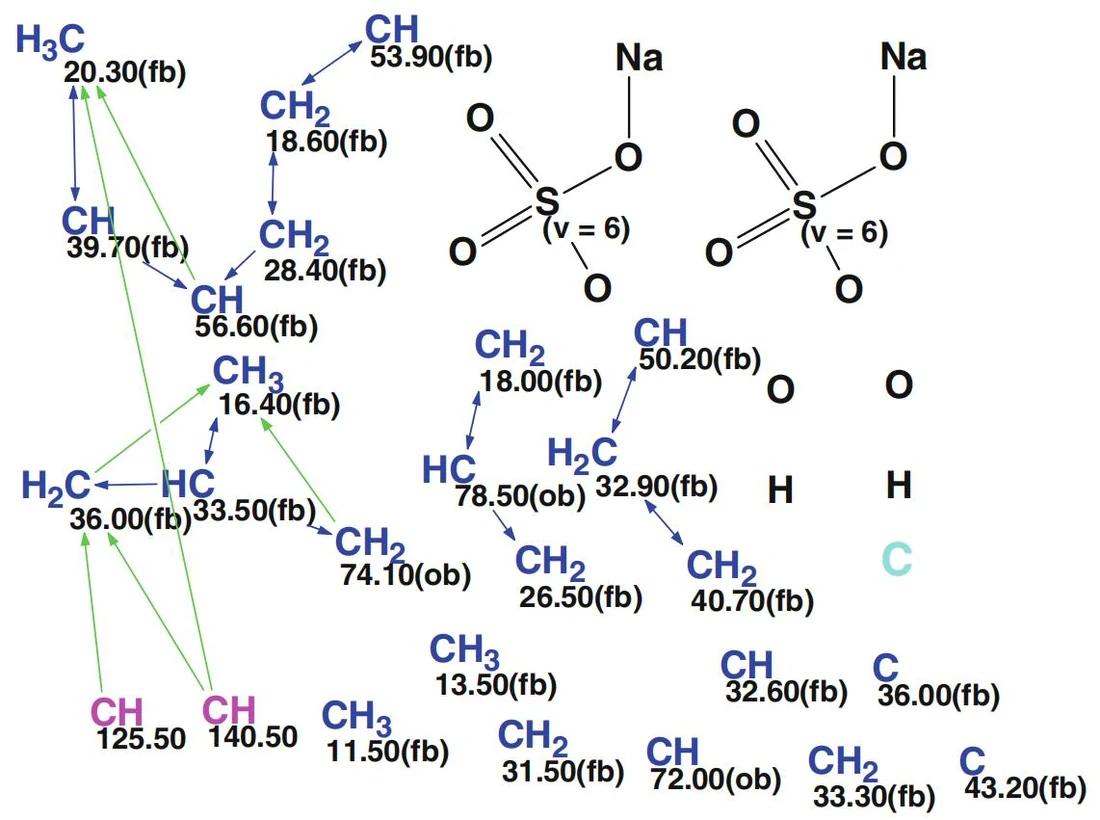
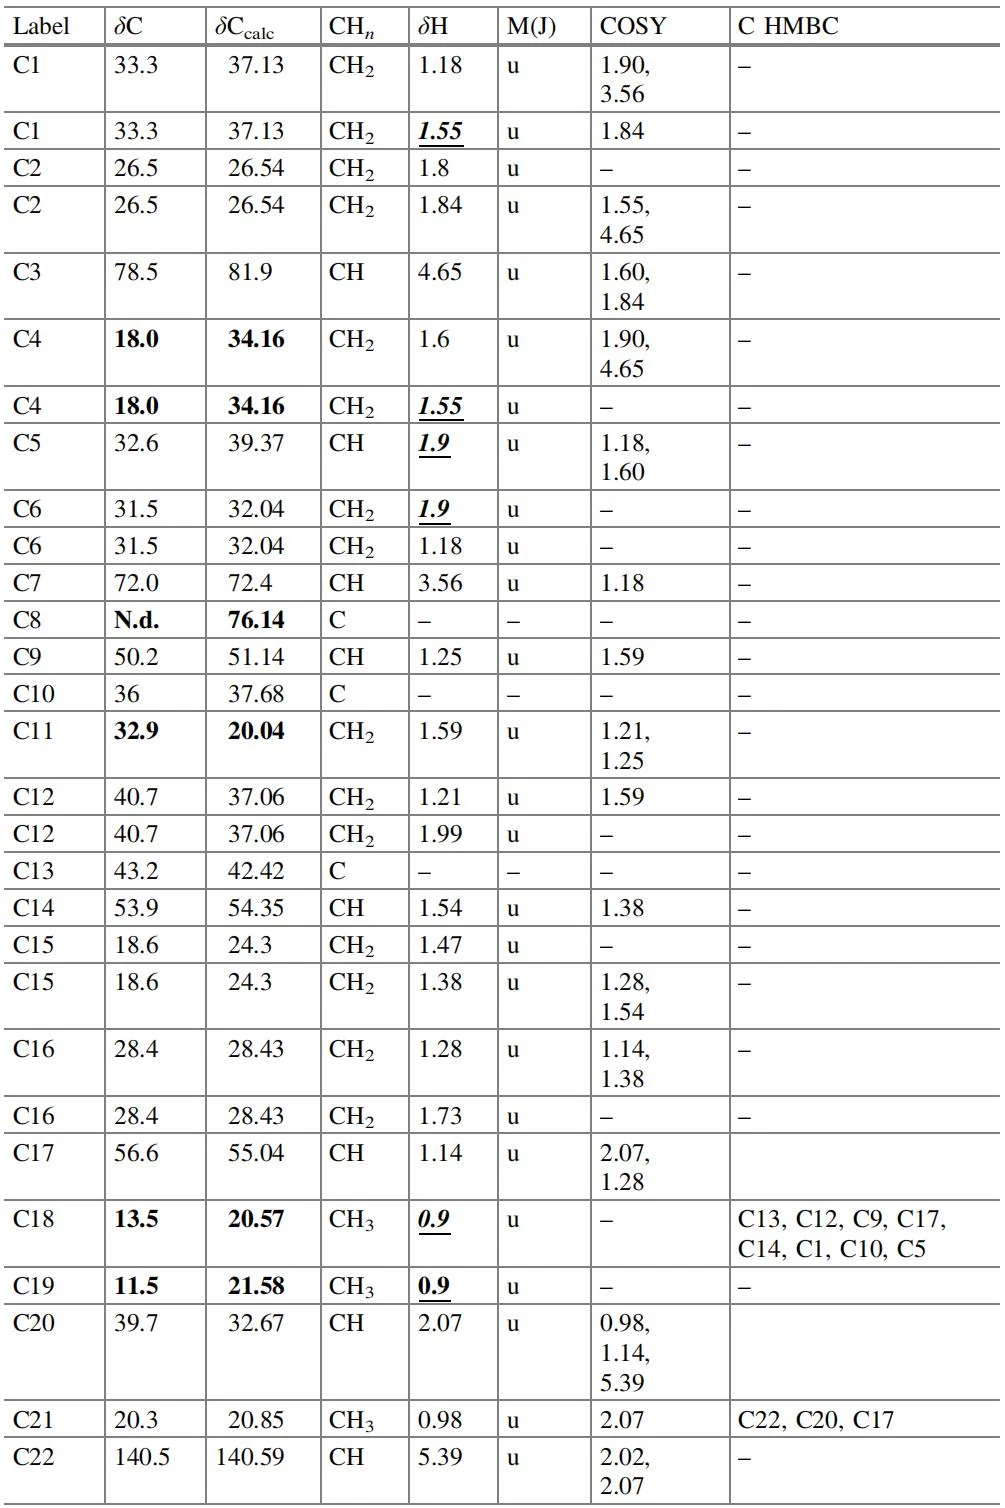
MCD 概述在构建分子连接图(MCD)时,两个SO₄Na 片段被手动添加,这一决定基于作者[14]从先前化学知识中提出的假设,并通过质谱(MS)分析得到进一步验证。在13C NMR 谱图中,有一个碳原子(C8)的信号未被观测到,因此在表4.12 中引入该原子时未标注其化学位移。基于其特性,该碳原子很可能是一个季碳,并在MCD 中被手动标记为“sp²或sp³”杂化,用浅蓝色表示。此外,从表4.12 中可以看到(斜体下划线部分),存在三对重叠的1H 信号,这为后续结构解析提供了重要线索。
尽管有九个碳原子未参与COSY 和HMBC 相关信号的生成,但它们均被赋予“fb”标签,明确规定了其允许的邻近原子(禁止与杂原子相邻)。这一策略不仅显著加快了结构生成的速度,还大幅缩小了输出文件的规模,提高了计算效率。
在二维NMR 数据中未发现任何矛盾,因此启动了严格的结构生成过程,并结合13C 化学位移预测,采用平均偏差阈值(d = 4 ppm)进行筛选。结果显示,候选结构数从最初的2,880 个缩减至20 个,最终筛选为8 个,整个计算过程仅耗时31.5 秒。排名前两位的结构如图4.28 所示。
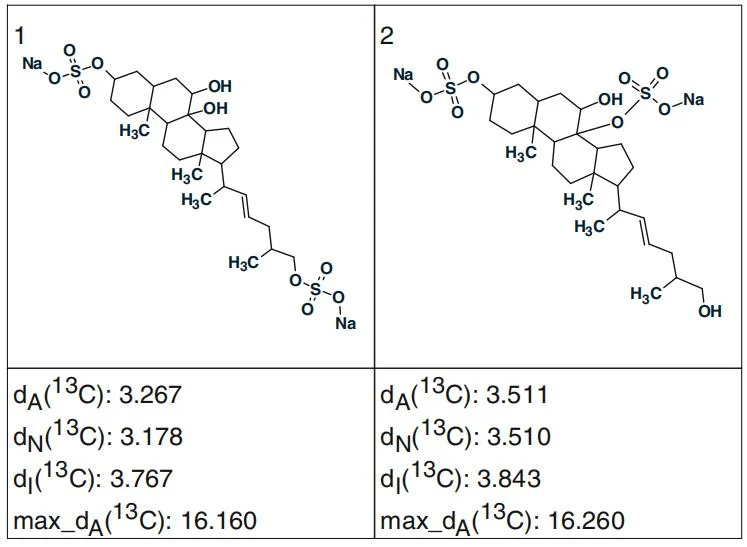
其中,结构#1 与Ascidia-SAAF 2 的分子结构完全一致,尽管偏差差异Δ = d(2) −d(1)较小,且偏差值整体较大。这一现象可以通过对比实验与预测的13C 化学位移值得到合理解释。表4.12 显示,C4 和C11 原子的实验值与计算值之间存在显著差异。为了进一步验证,针对这两个原子分别查看了化学位移计算后台数据信息,结果如图4.29 和图4.30 所示。
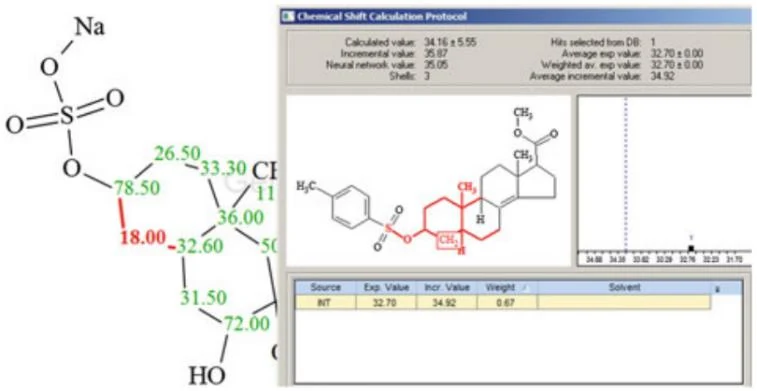
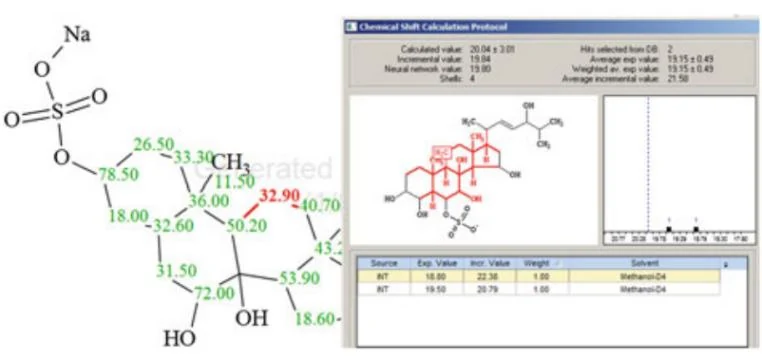
在第一种情况下仅找到一个匹配数据,而在第二种情况下则发现了两个匹配数据。这些学位移值为18.00 ppm 和32.90 ppm 的两个原子可能存在位置互换。当两者的化学位移值进行交换后,平均偏差值显著下降,具体表现为:dA = 2.28 ppm,dI = 2.864 ppm,dN = 2.17 ppm。这一显著降低的偏差值有力地支持了原子置换的合理性,进一步验证了分子结构的准确性。
根据作者[14]的研究,基于H22 和H23 之间较大的³JHH 偶合常数(17 Hz),可以确定结构4.23 中的C=C 双键为E 构型。然而,利用ACD Predictor 进行13C 化学位移预测也能够帮助区分E 构型和Z 构型。当将结构#1 转换为Z 构型时,化学位移偏差值显著增加至dA=2.584 ppm,dI = 3.08 ppm,dN = 2.42 ppm。因此,通过使用Structure Elucidator,不仅成功确定了未知化合物的正确结构,还明确了其双键周围的构型。
经过优化化学位移归属后的解析结构4.24 如下所示。